更新时间:2026-09-18 15:09 来源:BT科技网 编辑:清扬
这几年多了一条路:用生成式模型直接设计。两条路各有适用场景,下面用一份刚发表的论文和一套实际服务流程把它们讲清楚。
2026年9月,Cellular & Molecular Immunology在线发表了一项把纳米抗体(VHH)做成细胞因子模拟物、并推进到体内验证的研究。
αTIGIT-guided IL-15 mimetics drive potent and safe antitumor immunity by restoring tumor-infiltrating T cells期刊:Cellular & Molecular Immunology(Springer Nature),DOI: 10.1038/s41423-026-01467-y.
研究走的是羊驼免疫加噬菌体展示这条经典路线,时间节点排得很细:第 0 天用 500 μg 人源 IL-15Rβ/γc 胞外域(1:1)配合完全弗氏佐剂,颈部淋巴结三点注射;第 42 天用人抗原加强;第 49 天采血,分离 PBMC、Trizol 提 RNA、逆转录,PCR 扩增重链抗体片段后插入噬菌粒载体建库。之后是淘选、二代测序、CDR 区识别和克隆分型。
这条路线的好处是抗体来自真实免疫系统,亲和力和成药性起点高;代价是周期和成本都摆在那,而且能不能筛到针对目标表位的克隆,有运气成分。
初期结果说明了一件事:单独的 anti-IL-15Rβ VHH 或 anti-γc VHH 都激活不了 IL-15R 通路。这符合受体本身的结构要求,IL-15R 需要 β 和 γc 两条链同时被结合。
研究因此把两条 VHH 用 G3S 柔性接头连成双组分激动剂,再用 AlphaFold3 建立三元复合物模型,以天然 IL-15 和 Neoleukin-2/15 的信号组装作为参照做比较建模。模型给出的结论很明确:anti-IL-15Rβ 与 anti-γc 组成的 Fc 同源二聚体格式,最接近天然 IL-15 的结合几何与受体结合方式,后续功能实验与结构结论一致。
格式定下来之后是靶向改造。在 IL-15R 激动剂上再挂一个高亲和力抗 TIGIT 抗体,把信号限制在 TIGIT 阳性的瘤内 CD8+ T 细胞里。抗 TIGIT 这条臂同时识别鼠和人 TIGIT(专利 WO 2019/129221 A1),同一个分子可以跨模型使用。
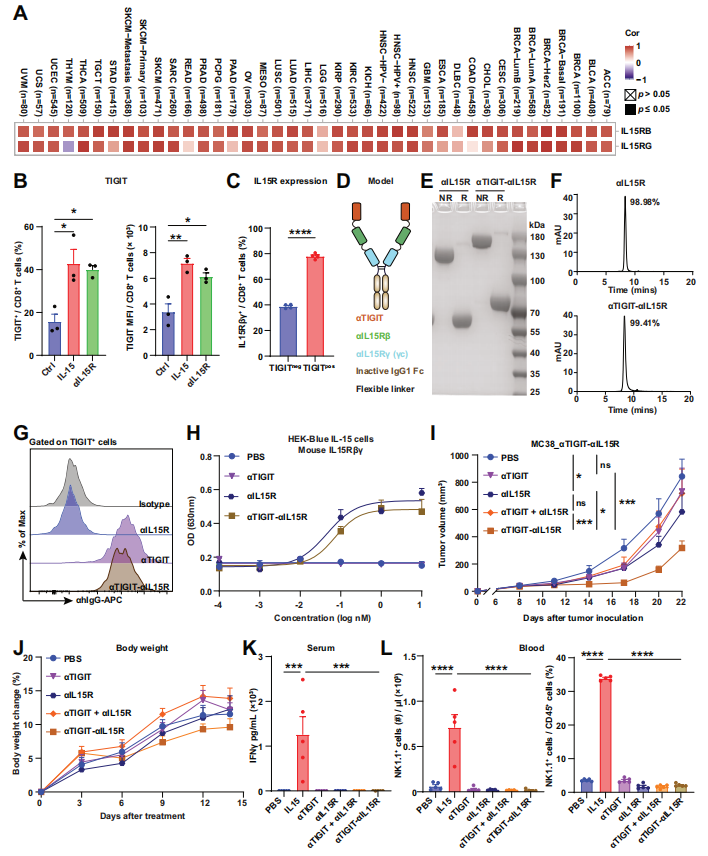
图1 αTIGIT-αIL15R三特异性分子格式示意:抗TIGIT臂、抗IL-15Rβ VHH、抗IL-15Rγc VHH通过柔性接头与失活IgG1 Fc组装。
最终分子αTIGIT-αIL15R的单体纯度经HPLC验证超过98%,半衰期比重组IL-15更长。在 MC38 荷瘤小鼠上的结果:
疗效优于未靶向的 IL-15R 激动剂,也优于 αTIGIT 与 αIL15R 联合给药组αIL-15R 激动剂用到 4 mg/kg(第 8 天)到 8 mg/kg(第 11、14、17 天),重组 IL-15 用 0.9 / 1.8 mg/kg;αTIGIT-αIL15R 组没有体重下降,体重随治疗持续上升检测不到血清细胞因子释放,外周血 NK 细胞没有扩增(重组 IL-15 组的 IFN-γ 明显升高)。
Rag1敲除小鼠里抗肿瘤作用完全消失,说明效果依赖成熟T/B细胞机制层面,TIGIT阳性 CD8+ T 细胞内的 IL-15R 信号被局部限制,IFNγ、TNFα、Granzyme B 三阳的 CD8+ T 细胞增多,TCF1+ 干性 CD8+ T 细胞扩增,TCR 多样性上升。人源化验证也做了:换用抗人 IL-15Rβ/γc 的 VHH,在人 IL-15RB/IL-15RG 敲入小鼠上同样有效。
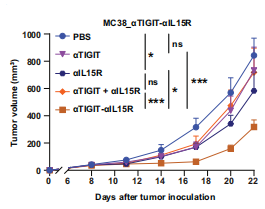
图2 MC38荷瘤模型的肿瘤生长曲线:αTIGIT-αIL15R 组生长最慢,优于单药及联合给药组。
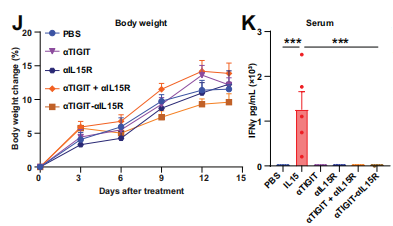
图3 安全性数据:左为体重变化(αTIGIT-αIL15R组体重持续上升),右为血清IFN-γ(仅重组IL-15组明显升高)。
IgGM是腾讯AI Lab与中国科学院微电子所提出的生成式模型,论文发表在 ICLR 2025。它同时生成抗体的序列和结构,可以针对给定抗原做从头设计,不需要事先知道框架区的实验结构,而这恰好是实际项目里最常缺的信息。
在纳米抗体数据集 SAb-2023H2-Nano 上的设计结果:
|
指标 |
IgGM |
DiffAb |
|
CDR1 序列恢复率 ↑ |
0.565 |
0.533 |
|
CDR2 序列恢复率 ↑ |
0.330 |
0.291 |
|
CDR3 序列恢复率 ↑ |
0.183 |
0.156 |
|
DockQ ↑ |
0.267 |
0.211 |
|
成功率 SR ↑ |
0.415 |
0.346 |
在常规抗体上,IgGM把最柔性的CDR-H3区序列恢复率做到36%,比当时的 dyMEAN 高 22.4%;换用 AlphaFold3 预测结构做初始化,对接成功率从 0.433 提到 0.627。除从头设计之外,模型还能做亲和力成熟、逆向设计、结构预测、人源化,以及 CDR 环与框架区的单独设计。框架区序列不完整也能跑,这一点对实际项目影响很大。
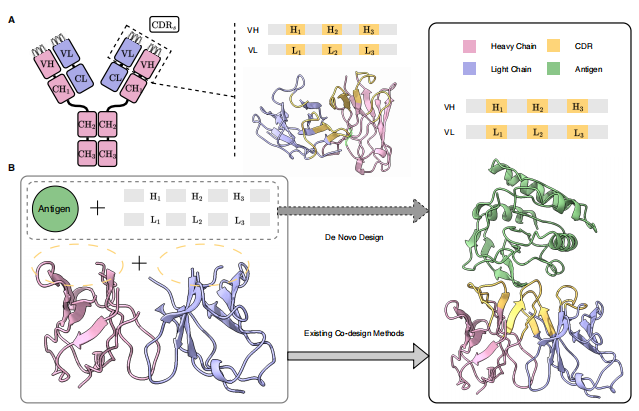
图4 IgGM的抗体结构表征与从头设计示意:抗原加VH/VL序列直接生成复合物结构,区别于依赖已知框架结构的共设计方法。
HDOCK的对接分数怎么读?
分数是负值,越负代表这个结合模型越可能成立。科晶在对接筛选流程里的做法是把它换算成置信度:
Confidence = 1 / [1 + e^(0.02 × (Docking Score + 150))]
按这个式子,对接分数−200时置信度约0.7。判读区间是:大于0.7结合可能性很大,0.5到0.7之间有可能结合,小于0.5基本不用考虑。需要说清楚的是,对接属于预测,计算时溶剂和蛋白柔性都做了简化,分数高不等于体内一定结合,它用来排序和缩小候选范围,替代不了实验验证。
pTM 和 ipTM 分别看什么?
pTM 是整体 TM 分数,评估整个三维结构折叠得准不准;ipTM 是界面预测 TM 分数,只看两个蛋白接触的那一块。判断有没有互作,ipTM 更值得盯,它直接对应结合界面。精筛的做法是取对接排名靠前的候选一对一建模,两个指标一起看。
两条路怎么选?
靶点是新的,拿不到免疫原或没有可用的框架结构,走 AI 从头生成;需要极高亲和力、表位已经被验证过,走免疫加噬菌体展示,再用计算做筛选和优化。两者也可以接起来:模型出候选,展示库做亲和力成熟。
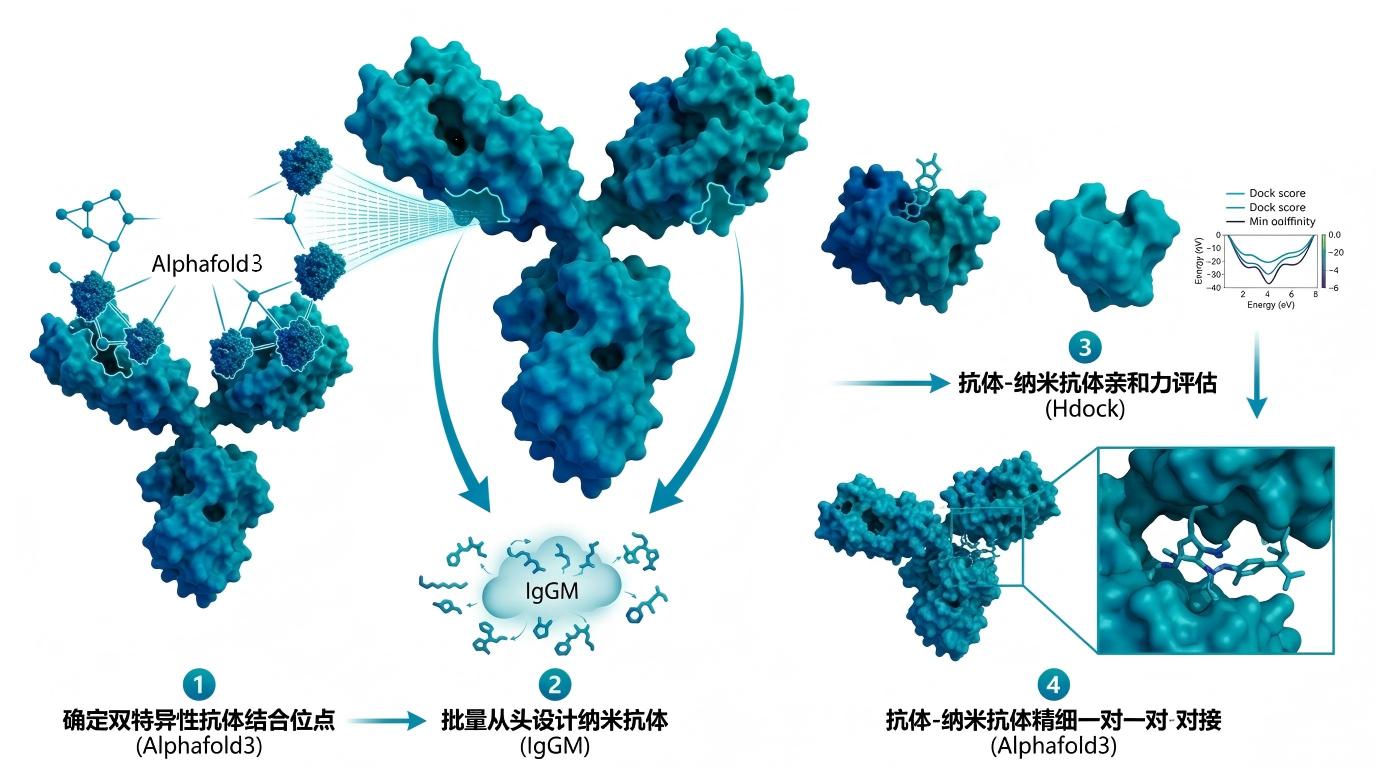
合肥科晶生物技术有限公司做计算驱动的抗体与纳米抗体设计,技术栈覆盖结合位点分析、IgGM 生成式设计、HDOCK 分子对接、AlphaFold3 复合物建模与结构分析,交付候选序列、结合位点信息与结构文件。项目卡在靶点明确、手上没有可用抗体的时候,可以先做一次结合位点分析,判断 AI 设计这条路走不走得通。